


Грибы и еще три группы эукариот помогали друг другу развить осмотрофное питание, обмениваясь генами
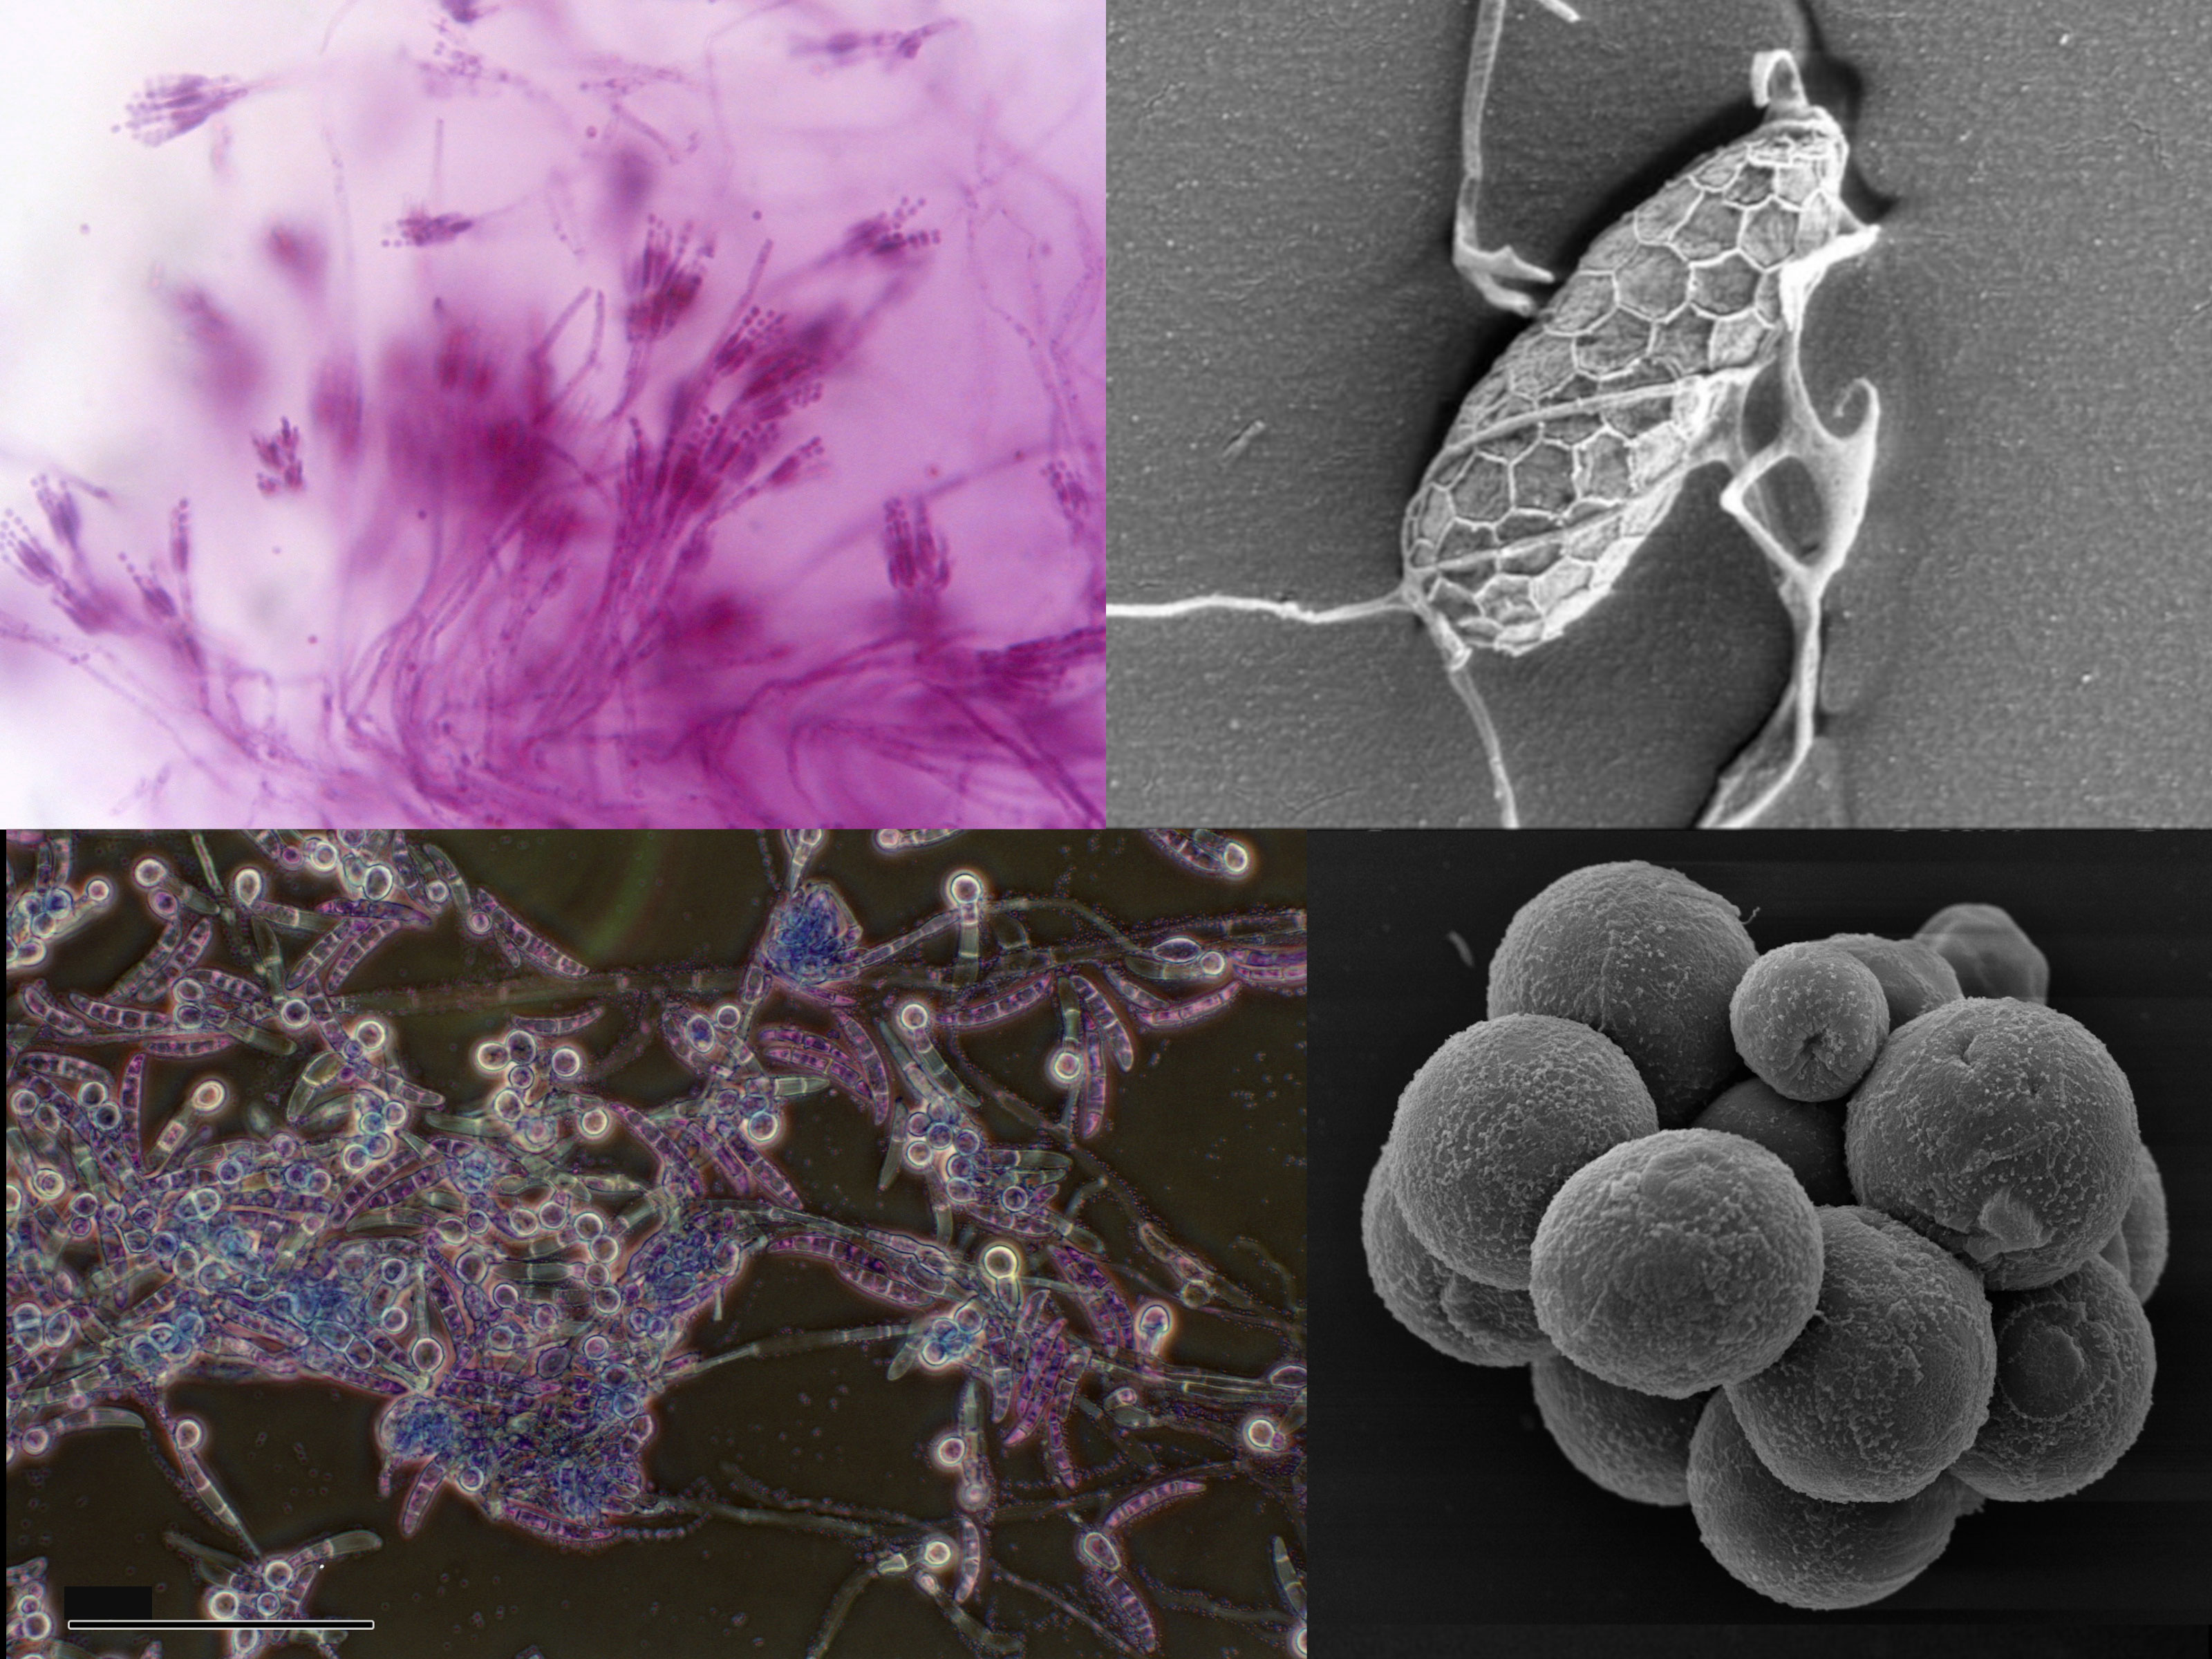
Рис. 1. Осмотрофные эукариоты. Вверху слева — пеницилл (Penicillium sp.), представитель грибов. Внизу слева — Pythium sp., представитель очень похожих на грибы, но не родственных им псевдогрибов (Pseudofungi). Вверху справа — Aplanochytrium sp., представитель лабиринтул: клетка с фрагментами эктоплазматической сети под электронным микроскопом. Внизу справа — Sphaeroforma arctica, представитель мезомицетозоев, похожих на эмбрионы животных. Фотографии с сайта en.wikipedia.org.
Несколько групп эукариот в ходе эволюции пришли к сходному способу питания — всасыванию питательных веществ из окружающей среды. Таких эукариот называют осмотрофными, и к ним относятся, в частности, все мицелиальные эукариоты — грибы и псевдогрибы, — а также псевдо-мицелиальные лабиринтулы. Такой образ жизни потребовал перестройки метаболизма для более эффективного усвоения поглощённых веществ. Международная группа исследователей выяснила, что в процессе эволюции будущие осмотрофы приобрели многие необходимые для этого новые гены методом горизонтального переноса — причем горизонтальный перенос генов массово происходил в том числе между самими осмотрофными эукариотами. Это стало сюрпризом для исследователей, так как механизм горизонтального переноса генов между эукариотами пока не до конца ясен. Новое исследование показывает его масштаб — и вызывает вопрос о том, как именно он мог происходить.
Если классифицировать всех эукариот — организмы с оформленным клеточным ядром — по способу их питания, то получится всего несколько типов. Большая часть эукариот, не умеющих фотосинтезировать — фаготрофы: они захватывают и поглощают свою добычу. Фотосинтетики фактически питаются неорганическими веществами и солнечным светом, поглощая их почти всей поверхностью тела. Но есть и третий, в каком-то смысле промежуточный тип: организмы, питающиеся готовыми органическими веществами из окружающей среды и всасывающие их всей поверхностью тела. Такие организмы условно называют осмотрофами.
Таковы почти все гетеротрофные бактерии, а вот среди эукариот таких организмов не так много. Классический пример осмотрофов среди эукариот — грибы (рис. 1, вверху слева). Как и животные, они гетеротрофны, то есть питаются готовыми органическими веществами. Но, имея «тело» из большого количества тонких нитей — гиф — они всасывают эту органику из окружающего раствора. Чтобы успешно питаться таким образом, грибы выделяют ферменты, расщепляющие биополимеры и переводящие их в раствор. Их гифы способны расти инвазивно, буквально продавливая и прорывая субстрат, захватывая новое пространство. Грибы идеально приспособлены к осмотрофному питанию. Но они не единственные среди эукариот.
Практически такой же морфологией и физиологией обладают псевдогрибы (в том числе оомицеты) — настолько, что их можно спутать с настоящими грибами (рис. 1, внизу слева). Но на биохимическом уровне обнаруживается, что эти организмы построены из совершенно иных материалов — например, основой клеточной стенки у них является не «грибной» хитин, а «растительная» целлюлоза. Филогенетически они гораздо ближе к охрофитовым водорослям, чем к грибам и животным. То есть грибы — это что-то вроде осмотрофных животных, а оомицеты — нечто вроде осмотрофных водорослей. Поразительно сходные жизненные формы развились у абсолютно разных организмов.
Есть ещё один пример «осмотрофных животных», которые ещё ближе к животным, чем грибы — мезомицетозои (или ихтиоспориды). У них нет и намёка на мицелий, вместо этого — многоклеточные структуры (рис. 2), напоминающие эмбрионы животных на ранних стадиях (см. Ядра мезомицетозоев делятся синхронно, как у зародышей животных, «Элементы», 05.06.2013). Но способ питания у них ровно такой же, как у грибов: поглощение готовых органических (а заодно и неорганических) веществ всей поверхностью «тела» — если такую структуру вообще можно назвать телом.
Рис. 2. Sphaeroforma arctica — представитель мезомицетозоев, окрашенный фаллоидином и DAPI. Без специальных знаний его легко можно спутать с бластулой какого-нибудь животного — ранней шарообразной стадией его эмбриогенеза. Изображение с сайта en.wikipedia.org
И наконец, есть дальние родственники оомицетов, лабиринтулы, которые тоже пришли к идее «гриба» — но совершенно инопланетным способом. Представьте себе колонию полностью самостоятельных клеток, которые с помощью специальных органелл строят вокруг себя трубки, покрытые мембраной и заполненные слизью (рис. 3). Они перемещаются внутри этих труб, всасывая органику из субстрата через мембраны и слизь. Это напоминает движение поездов метро в тоннелях — только если бы при этом поезда выделяли наружу ферменты, расщепляющие биополимеры, и всасывали их своей поверхностью, питаясь ими.
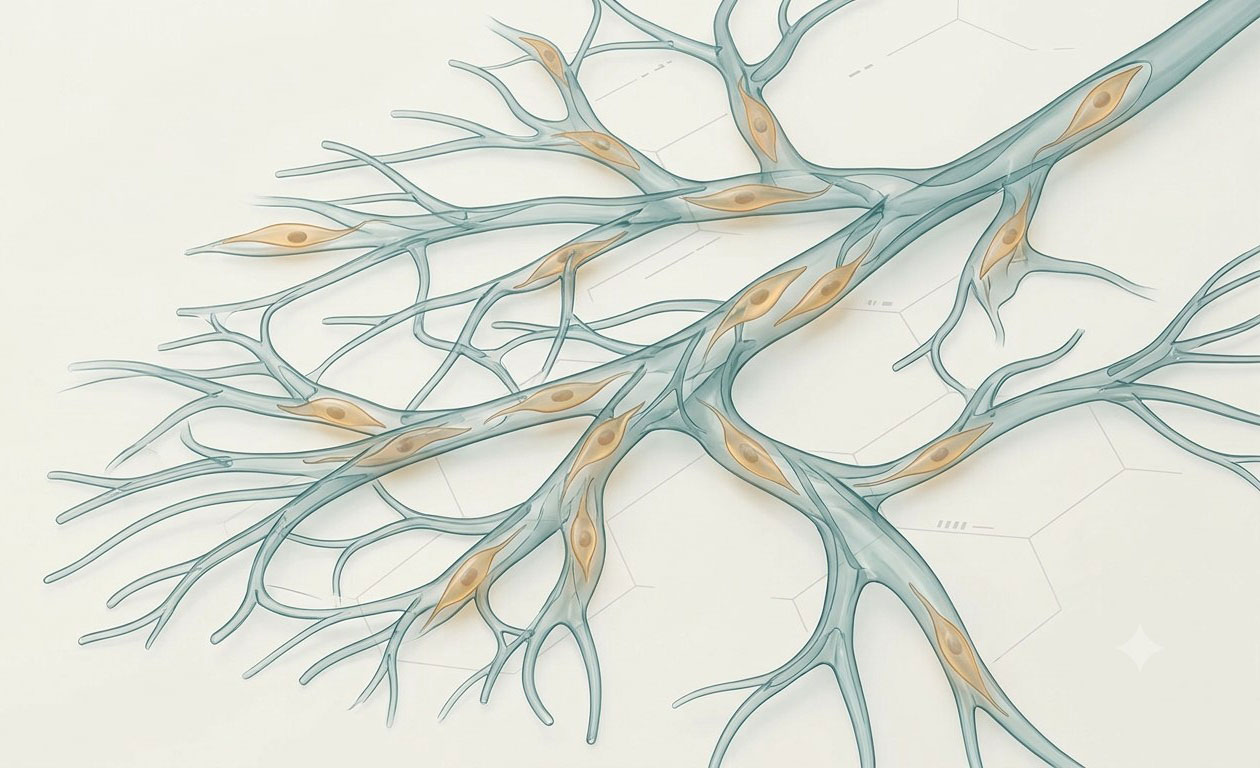
Рис. 3. Схематичное изображение жизненной формы лабиринтул. Вся колония лабиринтул, представленных веретеновидными клетками, живёт в общем «лабиринте» из трубок, построенных ими самими. Клетки передвигаются по нему, как машины в большом городе по дорогам. Получается что-то типа грибных гиф... но на совершенно другой основе. Изображение создано с помощью Google Gemini
Осмотрофный способ питания требует целого комплекса приспособлений: прочной клеточной стенки для поддержания высокого давления внутри клетки, высокоэффективной системы всасывания питательных веществ и секреции ферментов наружу, чтобы переваривать органические биополимеры вне себя, и чаще всего — разветвлённых структур вроде грибных гиф или эктоплазматической сети лабиринтул. К осмотрофному типу питания независимо пришли целых 4 группы эукариот, причём у некоторых он имеет и разный «дизайн». Как им это удалось — было ли это наследование от общего предка или конвергентная эволюция?
Этим вопросом задалась международная группа исследователей из Барселоны, Будапешта и Оксфорда. В своей работе, опубликованной в журнале Nature Ecology & Evolution, они исследовали белковые последовательности представителей четырёх монофилетических групп эукариот:
- Fungi — грибы,
- Pseudofungi — псевдогрибы,
- Teretosporea, к которым относятся мезомицетозои,
- и Labyrinthulea — лабиринтулы.
Прежде всего, авторы попробовали установить время происхождения каждой из этих групп методом молекулярных часов и получили для них всех очень сходные оценки: все они возникли примерно 1 миллиард лет назад, за исключением лабиринтул, для которых расчётное время составляет «всего каких-то» 600 миллионов лет назад. Правда, для них оценка может быть искусственно «омоложенной» из-за недостаточного объёма выборки — в таком случае все четыре осмотрофные группы имеют примерно один и тот же возраст: плюс-минус 1 миллиард лет назад. Геохронологически это тонийский период — завершение «скучного миллиарда», совпавшее с началом эволюции животных и предшествовавшее эпохе «Земли-снежка», ещё более обогатившей Землю многоклеточной жизнью (см. Эпоха «Земли-снежка» могла дать импульс к развитию многоклеточности, «Элементы», 05.08.2024). Так что появление осмотрофных эукариот в молекулярной «летописи» по времени близко к другим событиям молекулярной и морфологической эволюции, которые должны были вскоре изменить наш мир.
Далее исследователи проверили, какие эволюционные семейства белков представлены у большинства осмотрофных эукариот шире, чем у эукариот с другими типами питания. В качестве метрики представленности использовалась количество белков в каждом семействе. Найденные таким образом семейства белков назвали осмокластерами — они фактически указывали на универсальные адаптации к осмотрофному образу жизни либо у всех четырёх групп, либо у большинства из них.
Ожидаемо большая часть осмокластеров оказалась связана с метаболизмом — если ты не можешь заглотить кусочек добычи и не спеша его переваривать, а взамен всасываешь всем телом что придётся, метаболические пути должны быть более мощными и разветвлёнными, чтобы максимально усвоить полученное. Этим же объясняется присутствие в осмокластерах регуляторов сигнального пути TOR — того самого, который эволюционно связан с мишенью рапамицина млекопитающих (mTOR) и к которому присматриваются борцы со старением. Стареть осмотрофам, конечно, неактуально. Если ты гриб, ты в каком-то смысле вечно молодой. Но этот сигнальный путь ограничивает у них рост — и в этом смысле его регулировка им так же необходима, как разветвленный метаболизм.
Само собой, в осмокластеры попало и большое количество белков-транспортёров — ведь именно они обеспечивают всасывание. Помимо, например, транспортёров для сахаров (что неудивительно), в осмокластерах оказались белки-переносчики для ионов типа натрия, фосфата и магния. Логика тоже простая: если ты осмотроф, то регулировка осмотического давления должна быть на высоте!
Количество белков из этих семейств, согласно филогенетическим реконструкциям авторов, резко подскочило в четырёх осмотрофных группах вскоре после их обособления от других эукариот. Вкупе с большой эволюционной дистанцией между ними это позволяет предположить, что лабиринтулы, мезомицетозои, псевдогрибы и грибы приходили к осмотрофному типу питания конвергентно — и независимо друг от друга приобретали необходимые для него «навыки».
Но как они это делали? Откуда у них взялись гены, кодирующие белки осмокластеров? В 40 осмокластерах (что составляет примерно 20% от них всех) исследователи выявили признаки горизонтального переноса генов.
А что за признаки горизонтального переноса генов? Их много, но самым «ходовым» у биоинформатиков является метод сравнения филогений. Сначала строится (или берётся из литературных источников) филогенетическое дерево, построенное по консервативным генам и белкам — 16s-рРНК, ферментам репликации ДНК и т. п. Оно хорошо отражает филогению самих видов и таксонов. Если таких работ было много, и филогения рассматриваемых групп организмов хорошо описана в литературе, то такое дерево может в работе прямо и не присутствовать.
А затем происходит самое главное: строится дерево изучаемых белков и проверяется, насколько оно соответствует филогении самих видов и таксонов. Там, где соседствуют два вида или таксона, которые на «референсном» дереве находятся далеко друг от друга, — предполагается горизонтальный перенос генов. Например, если вдруг окажется, что какой-то ген или белок очень похож у грызунов и у покрытосеменных растений — а, скажем, у хищных млекопитающих он совсем другой — то это явно горизонтальный перенос. Похожая логика была применена и здесь — только вместо растений и животных другие таксоны, которые столь же далеки друг от друга эволюционно, биохимически и структурно.
Самые ранние такие события, на заре эволюции осмотрофов, были горизонтальными переносами от неосмотрофных эукариот или от бактерий. Эукариотические осмотрофы буквально собирали свои сверхспособности с миру по нитке. По нитке ДНК.
Но период их активной диверсификации совпал с многократным горизонтальным переносом генов уже между осмотрофами: грибы, псевдогрибы, лабиринтулы и мезомицетозои обменивались друг с другом генетическими решениями. Эти потоки генов визуализированы на рис. 4, что позволяет оценить их масштаб. Чаще всего лабиринтулы обменивались генами с мезомицетозоями (вероятно, потому что обе группы живут в воде), а грибы — с псевдогрибами (потому что обе группы освоили наземно-воздушную среду). Большинство перенесённых генов было связано с метаболизмом — как и в осмокластерах вообще, без учёта горизонтальных переносов. В общем, на заре своего существования осмотрофные эукариоты обменивались друг с другом метаболическими наработками — в виде генов.
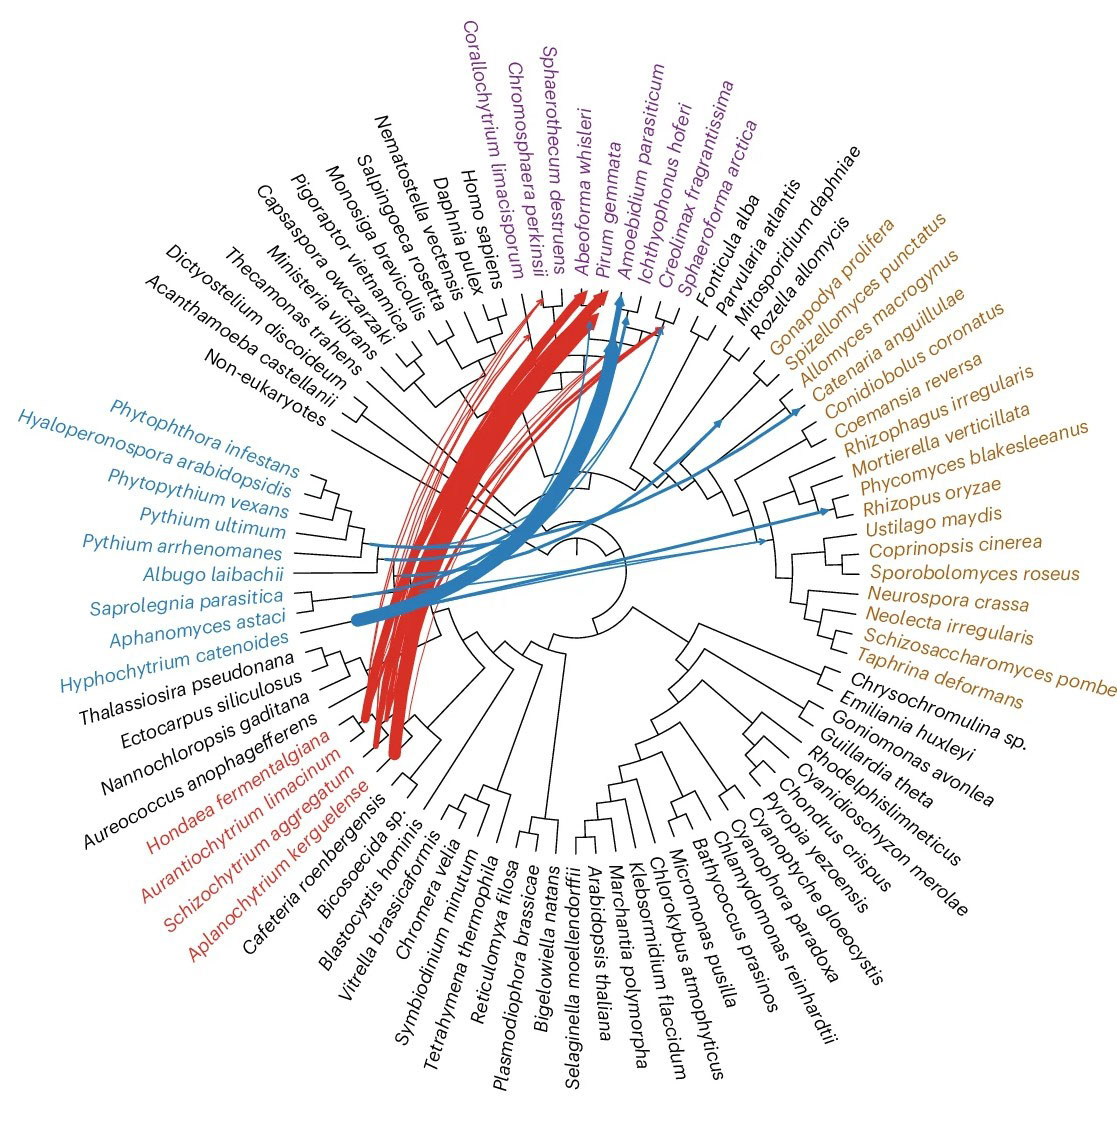
Рис. 4a. Горизонтальные переносы генов от псевдогрибов (синие стрелки) и лабиринтул (красные стрелки) к грибам и группе Teretosporea. Группы стрелок выглядят как потоки генов, которые Гергей Сёллёши, один из авторов исследования, поэтично называет «магистралями горизонтального переноса». Клады на филогенетических деревьях: красным обозначены лабиринтулы, синим — псевдогрибы, фиолетовым — группа Teretosporea, бежевым — грибы. Чёрные — другие эукариоты, добавленные для репрезентативности выборки. В целом выборка эукариот для этого филогенетического исследования максимально покрывает домен эукариот — поэтому корень у этих деревьев находится там же, где у всех эукариот, соответствуя LECA (last eukaryotic common ancestor) — последнему общему предку всех эукариот. Рисунок из обсуждаемой статьи
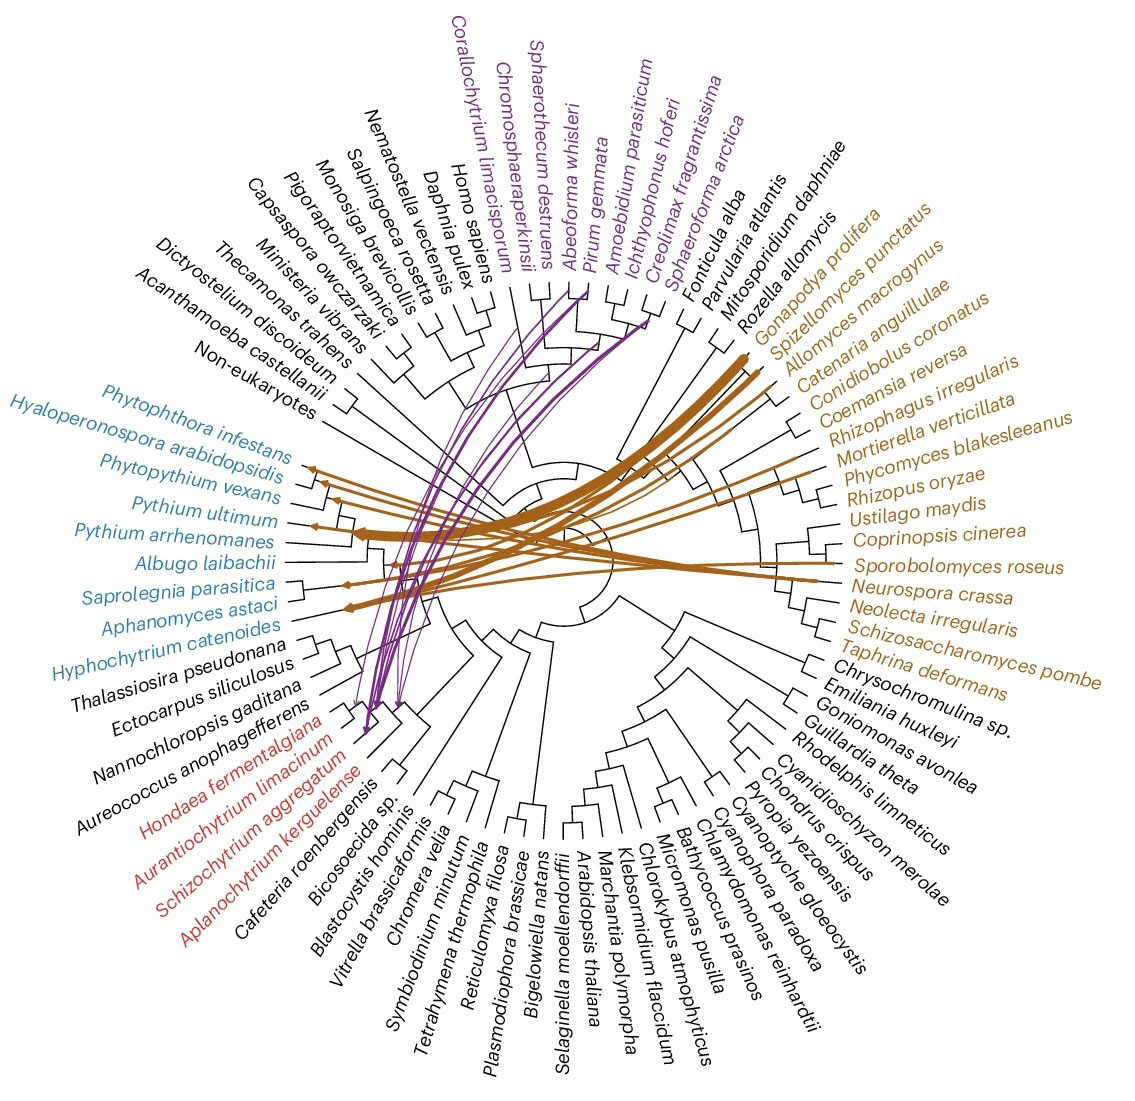
Рис. 4b. Горизонтальные переносы генов от грибов (бежевые стрелки) и группы Teretosporea (фиолетовые стрелки) к псевдогрибам и лабиринтулам. Группы стрелок также выглядят как «магистрали горизонтального переноса». Обозначения клад и корень дерева такие же, как на рис. 4a. Рисунок из обсуждаемой статьи
Это и есть основной сюрприз нового исследования: горизонтальный перенос генов между эукариотами до сих пор остаётся для биологов сложной проблемой. Горизонтальный перенос генов между бактериями — обычное дело, потому что у них есть понятные механизмы для этого: усвоение чужеродной ДНК и конъюгация. Эукариоты тоже вобрали в себя много бактериальных генов — частично из-за того, что мы в принципе химеры, собранные из нескольких прокариот. Но полного понимания механизма горизонтального переноса генов между эукариотами до сих пор нет, хотя он ранее неоднократно фиксировался в разных исследованиях. Обсуждаемое исследование показывает, что он может (или мог?) происходить в больших масштабах — но как?
«Главный вопрос теперь заключается не в том, происходит ли горизонтальный перенос генов у эукариот, а в том, как он происходит. Мы по-прежнему очень мало знаем о механизмах, лежащих в основе этого процесса у эукариот», — говорит Эдуард Оканья-Пальярес, первый автор статьи. — «Например, происходил ли он за счёт поступления чужеродной ДНК непосредственно из окружающей среды или через посредство вирусов?»
Упоминание вирусов тут не случайно. Научный журналист Андрей Константинов, автор телеграм-канала «Кот Шрёдингера», в своей заметке напоминает о недавнем открытии новых гигантских вирусов, способных переносить гены между разными водорослями (см. C. Wilcox. Alien-looking viruses discovered in Massachusetts forest. Science, 25.07.2023). Эти и другие вирусы могут быть одним из механизмов горизонтального переноса генов между эукариотами. Это ещё более вероятно в свете того, что многие белки, необходимые для развития плода и нормальной работы мозга, были принесены плацентарным млекопитающим ретровирусами — то есть давними родственниками ВИЧ. Без ретровирусов у нас не было бы: синцитина; миелина в привычном нам виде; некоторых белков внутренней иммунной системы мозга; гена Arc, необходимого для памяти и обучения. Если даже регуляторный аппарат нашего выдающегося мозга был построен из принесённого вирусами материала, то, может быть, и с осмотрофами случилось примерно то же самое?
Пока такой «вирусный» сценарий остаётся лишь рабочей гипотезой, а не доказанным эволюционным фактом. Тем не менее, обсуждаемое исследование показывает, что эукариоты массово обменивались генами в своей эволюции — и такой перенос служил двигателем конвергентной эволюции сходных форм жизни. Механизм этого переноса превращается в ещё более актуальную научную проблему, которая только ожидает своего решения.
Георгий Куракин
Источник: Элементы
 Поделиться