


Создана синтетическая клетка, способная питаться, расти, делиться и эволюционировать
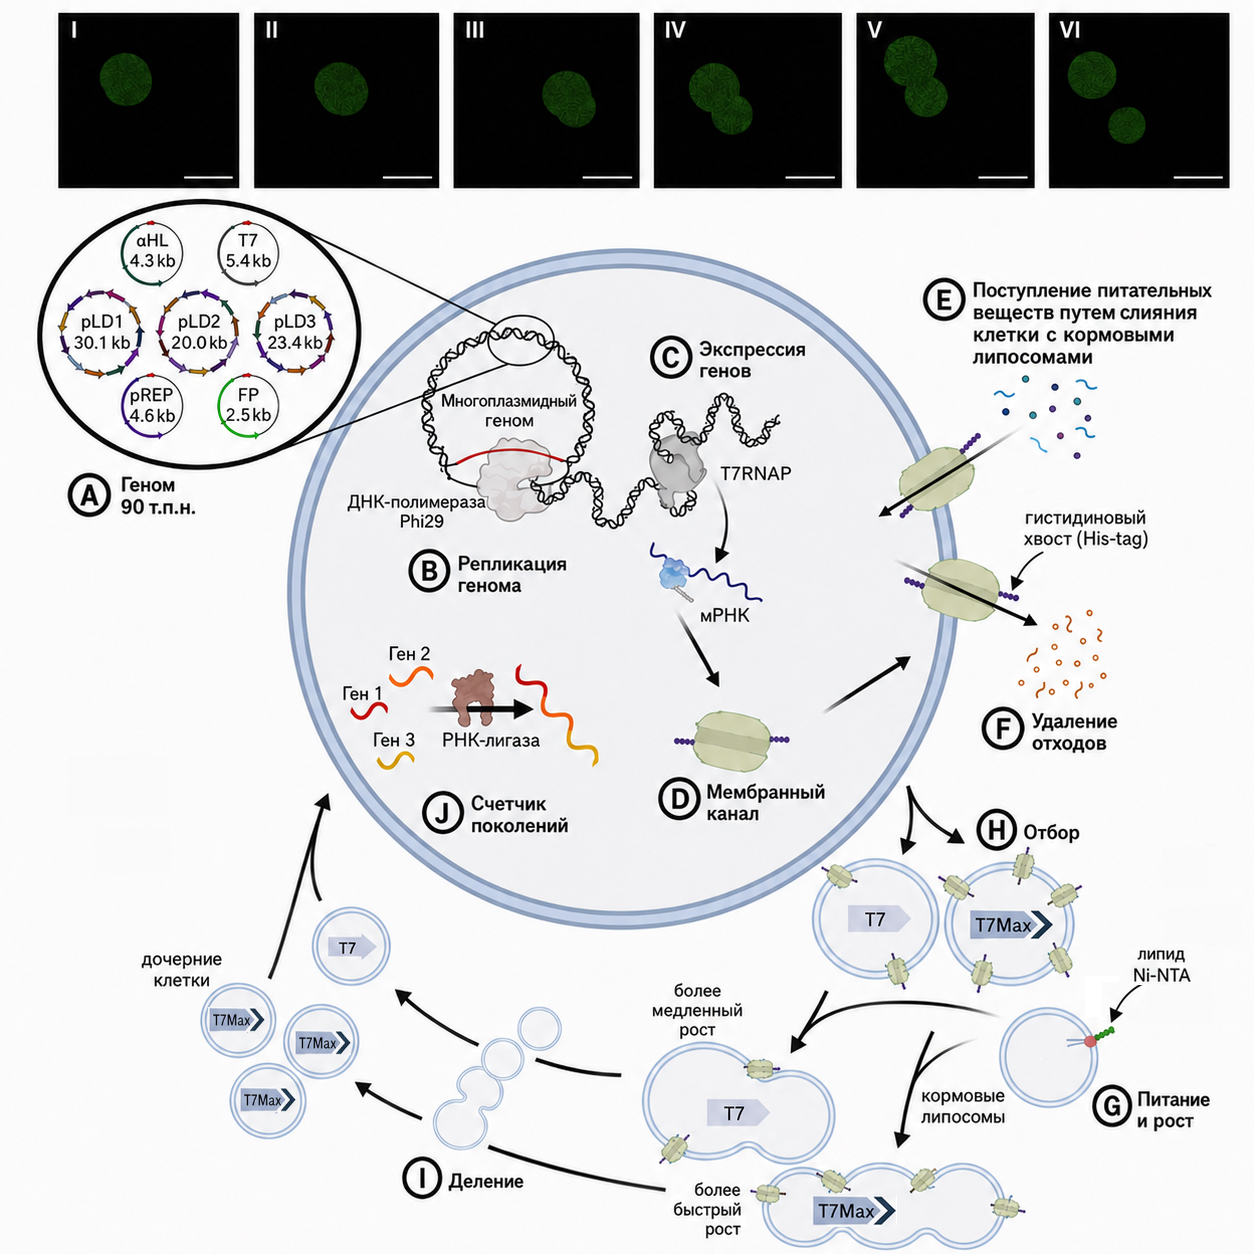
Рис. 1. Синтетическая клетка, способная к питанию и размножению. Вверху — микрофотографии, показывающие рост и деление синтетической клетки. Клетка экспрессирует зеленый флуоресцирующий белок GFP. Длина масштабного отрезка — 5 мкм. A — геном синтетической клетки состоит из семи плазмид общей длиной 90 тысяч пар нуклеотидов. B — геном реплицируется при помощи ДНК-полимеразы фага Φ29, закодированной в одной из плазмид. C — белки, закодированные в геноме синтетической клетки, экспрессируются при помощи аппарата транскрипции и трансляции, часть которого закодирована в геноме самой клетки (в том числе ДНК-зависимая РНК-полимераза T7RNAP и аминоацил-тРНК-синтетазы), а часть, включая готовые рибосомы, поступает с пищей. D — один из белков, закодированных в геноме клетки, — модифицированный мембранный канал с «гистидиновым хвостом» (пептидом из шести остатков гистидина). Этот белок синтезируется внутри клетки и встраивается в ее мебрану. E — клетка питается, сливаясь со специально сконструированными кормовыми липосомами — мембранными пузырьками, внутри которых находится всё необходимое для роста клетки, включая рибосомы и нуклеозидтрифосфаты. Слияние клетки с кормовой липосомой происходит благодаря тому, что находящийся на мембране кормовой липосомы липид Ni-NTA соединяется с гистидиновым хвостом мембранного канала клетки. F — низкомолекулярные отходы жизнедеятельности выходят из клетки через мембранные каналы путем простой диффузии. Никаких специальных выделительных механизмов у клетки нет. Крупные молекулы, такие как белки и нуклеиновые кислоты, через каналы не проходят и остаются внутри клетки. G — рост клеточной мембраны тоже происходит благодаря слиянию с кормовыми липосомами, мембраны которых имеют тот же состав. H — авторам удалось смоделировать естественный отбор. У одних клеток ген мембранного канала, необходимого для питания, находится под управлением слабого промотора (T7), у других — под управлением сильного промотора (T7max). I — клетки T7max производят больше мембранных каналов и поэтому активнее питаются (чаще сливаются с кормовыми липосомами), быстрее растут и чаще делятся. В результате частота аллеля T7max в популяции растет, что можно интерпретировать как минимальный акт дарвиновской эволюции. J — в кормовые липосомы добавляли специальные метки — короткие молекулы РНК, которые сменялись в каждом раунде кормления и служили счетчиком поколений. Рисунок из обсуждаемого препринта
Синтетическая биология стремится создать искусственную клетку — систему, которая могла бы самостоятельно поддерживать обмен веществ, расти, копировать свой геном и делиться, и при этом состояла бы из полностью известных компонентов с понятной функцией. Такая клетка помогла бы определить минимальный набор молекул и процессов, необходимых для жизни, а также могла бы стать управляемой платформой для биотехнологии. Ранее путем сокращения геномов природных бактерий были получены упрощенные клетки, а отдельные клеточные функции (включая синтез белка, репликацию ДНК и рост мембраны) удавалось воспроизвести в искусственных мембранных пузырьках — липосомах. Однако до сих пор не существовало искусственной клетки, собранной из неживых компонентов, в которой происходили бы сразу все основные жизненные процессы: питание, рост, репликация генома, экспрессия генов, влияние генотипа на фенотип, а также размножение с наследственностью и отбором. Американские биоинженеры опубликовали препринт, в котором сообщили о создании синтетических клеток, у которых есть все эти способности, хоть и с оговорками. Клетки содержат геном длиной около 90 тысяч пар оснований, в котором закодирована часть белков, необходимых для репликации ДНК, транскрипции и трансляции. Питаются клетки путем слияния со специальными «кормовыми липосомами», содержащими все недостающие компоненты, включая готовые рибосомы, липиды для роста мембраны, ферменты и низкомолекулярные вещества. Удалось продемонстрировать рост и размножение синтетических клеток в течение пяти поколений. Кроме того, удалось смоделировать зависимость фенотипа от генотипа и естественный отбор. В геноме искусственной клетки закодирован мембранный белок α-гемолизин (αHL), необходимый для слияния с кормовыми липосомами. В условиях дефицита пищи селективное преимущество получают клетки с более сильным вариантом промотора αHL. Такие клетки производят больше αHL, чаще сливаются с кормовыми липосомами и, как следствие, быстрее растут и размножаются. В результате частота встречаемости в генофонде сильного варианта промотора растет. Это можно рассматривать как элементарный акт дарвиновской эволюции. Исследование представляет собой важный шаг к созданию искусственной жизни, хотя над повышением автономности полученной системы еще предстоит поработать.
Искусственные клетки: зачем они нужны и как их изготовить?
Создание искусственной клетки — одна из самых амбициозных задач современной биологии. Искусственные клетки могли бы стать программируемыми микрофабриками для производства ферментов, лекарств и других ценных веществ или миниатюрными биороботами, выполняющими разнообразные задачи внутри живых организмов или в окружающей среде. В отличие от обычной генетически модифицированной бактерии, искусственная клетка не обязана нести всё накопленное эволюцией наследие: в нее можно включить только нужные нам генетические программы плюс необходимый (и нами же определенный) минимум самообеспечения. Поэтому в идеале такие системы могли бы стать максимально эффективными и контролируемыми.
Кроме того, попытка собрать живую клетку «с нуля», из известных компонентов с понятными функциями — отличный способ разобраться в том, насколько хорошо мы понимаем, что такое жизнь (). Успех предприятия стал бы не только великим достижением синтетической биологии (см. также Synthetic biology), но и ценным подспорьем для науки об абиогенезе (см. также Abiogenesis).
Существуют два основных подхода к этой задаче. Первый подход — нисходящий (top-down). Он начинается с живой клетки, из генома которой последовательно удаляют гены, необязательные для жизни в благоприятной лабораторной среде. По этому пути далеко продвинулась группа Крейга Вентера (Craig Venter), занимающаяся минимизацией генома бактерий рода Mycoplasma (см.: Изготовлена бактерия с синтетическим минимальным геномом, «Элементы», 28.03.2016; Бактерия с синтетическим минимальным геномом сохранила способность к адаптивной эволюции, «Элементы», 24.08.2023).
Однако даже в сокращенном до минимума бактериальном геноме остается, к нашему стыду, немало генов с неизвестными функциями. То есть опыты показывают, что без данного гена бактерия жить не может, но чем он ей так дорог и зачем конкретно нужен, остается неясным ().
Второй подход — восходящий (bottom-up). Он состоит в сборке искусственных клеткообразных систем из отдельных неживых компонентов — молекул и молекулярных комплексов. Все компоненты помещают внутрь липосом — замкнутых пузырьков, окруженных липидной мембраной. Такие липосомы, называемые также протоклетками, используются в исследованиях абиогенеза, например в работах Джека Шостака (Jack W. Szostak) и его коллег (см.: Искусственные протоклетки синтезируют ДНК без помощи ферментов, «Элементы», 09.06.2008; Синтез РНК в «протоклетках» всё-таки возможен, «Элементы», 02.12.2013). Одно из преимуществ восходящего подхода в том, что он облегчает задачу полного понимания и контроля всех процессов, происходящих в искусственной клетке.
В последние годы биоинженерам удалось заметно усовершенствовать отдельные функции искусственных клеток. Уже изготавливаются липосомы, внутри которых идет репликация ДНК, экспрессируются отдельные гены и происходят те или иные биохимические процессы. Например, недавно были созданы искусственные клетки с шестью генами, два из которых обеспечивают репликацию ДНК, а четыре отвечают за синтез фосфолипидов — компонентов клеточной мембраны. Эти клетки действительно реплицируют свою ДНК и синтезируют фосфолипиды, но при этом не способны к росту и размножению ().
Есть успехи и в разработке липосом, способных получать необходимые вещества из внешней среды («питаться»), расти и размножаться путем деления или почкования ().
Однако до сих пор никому не удавалось соединить в одной искусственной клетке сразу весь набор ключевых жизненных функций: питание, рост, размножение, репликацию ДНК, экспрессию генов (транскрипцию и трансляцию), да еще и сделать так, чтобы генотип клеток влиял на их фенотип и дарвиновскую приспособленность. Напомню, что, согласно классическому определению NASA, жизнь — это «самоподдерживающаяся химическая система, способная к Дарвиновской эволюции» (A self-sustaining chemical system capable of Darwinian evolution). Чтобы эволюция стала возможной, разные варианты (аллели) генов искусственных клеток должны обеспечивать разную скорость их размножения в данных условиях среды. До сих пор не удавалось собрать из отдельных неживых компонентов систему, которая проходила бы несколько последовательных циклов репликации ДНК, питания, роста и деления и в которой наследственные различия влияли бы на репродуктивный успех.
Искусственная клетка нового типа
Эту задачу попытались решить ученица Джека Шостака Катажина Адамала (Katarzyna P. Adamala), долгое время успешно занимавшаяся протоклетками в контексте абиогенеза, и ее коллеги из Университета Миннесоты. В препринте, опубликованном на сайте bioRxiv, исследователи сообщили о создании синтетической клетки, обладающей всеми перечисленными свойствами, — пусть пока в самом примитивном виде и с оговорками.
Устройство искусственной клетки и ее главные достижения отражены на рис. 1. В основе системы лежит липосома — пузырек диаметром в несколько микрометров, окруженный классической двуслойной липидной мембраной. Мембрана состоит из ненасыщенных фосфолипидов DOPC (диолеоилфосфатидилхолин) и DOPE (диолеоилфосфатидилэтаноламин), а также холестерина. Такой состав обеспечивает, с одной стороны, относительную устойчивость и прочность мембраны, с другой — эластичность и способность к сильному искривлению и слиянию. Конечно, это весьма сложный и «эволюционно продвинутый» вариант мембраны, имеющий мало общего с примитивными мембранами первых протоклеток на заре жизни, которые пытается моделировать Шостак. Ведь обсуждаемая работа — по синтетической биологии, а не по абиогенезу.
Внутри липосомы находится искусственный геном общей длиной 90,3 тысячи пар нуклеотидов. Он разделен на семь кольцевых плазмид и кодирует около сорока белков, в том числе:
- 20 аминоацил-тРНК-синтетаз (ферментов, присоединяющих аминокислоты к соответствующим тРНК),
- 10 других белков, необходимых для трансляции: факторы инициации трансляции (см. также Initiation factor), факторы элонгации трансляции (см. также Elongation factor), факторы терминации транскрипции (Termination factor), фактор рециклизации рибосом RRF (см. Ribosome recycling factor) и метионил-тРНК-формилтрансферазу (см. Methionyl-tRNA formyltransferase),
- ДНК-полимеразу бактериофага Φ29 (обеспечивает репликацию генома),
- РНК-полимеразу фага T7 (обеспечивает транскрипцию),
- зеленый флуоресцентный белок GFP, не нужный самим клеткам, но облегчающий наблюдение за ними,
- модифицированный альфа-гемолизин αHL (см. также Alpha hemolysin) — мембранный белок, необходимый искусственным клеткам для их своебразного «питания» (см. ниже).
Геном кодирует лишь часть компонентов, необходимых для работы клетки. В нем нет генов рибосомных РНК и рибосомных белков, цитоскелета, ферментов энергетического метаболизма, синтеза липидов, аминокислот, нуклеотидов и АТФ. Поэтому для того, чтобы искусственные клетки росли и размножались, многие необходимые молекулы исследователи изначально поместили внутрь липосом, а затем регулярно добавляли с пищей.
Начальное содержимое липосомы представляет собой модифицированную систему PURE — бесклеточную смесь, позволяющую проводить транскрипцию и трансляцию вне живой клетки (). В отличие от бактериального лизата, PURE собирается из отдельных очищенных компонентов, причем известен точный список всех компонентов и их концентрации. Низкомолекулярные вещества добавляют просто в виде химических реактивов, белки получают из генетически модифицированных (рекомбинантных) клеток E. coli. В состав PURE входят тРНК и готовые рибосомы, тоже выделенные из E. coli.
Таким образом, геном искусственной клетки позволяет синтезировать новые экземпляры некоторых важных белков, но для запуска и продолжения работы системы необходимо поступление этих и многих других белков извне.
Кроме того, «цитоплазма» искусственной клетки изначально содержит все двадцать аминокислот, четыре рибонуклеозидтрифосфата (АТФ, ГТФ, ЦТФ, УТФ), четыре дезоксирибонуклеозидтрифосфата для репликации ДНК, набор тРНК, соли калия и магния, креатинфосфат, служащий запасом химической энергии для регенерации нуклеозидтрифосфатов, и ряд вспомогательных веществ.
Искусственные клетки «питаются» путем слияния со специальными кормовыми липосомами — маленькими мембранными пузырьками, содержащими фактически готовую порцию полноценной «цитоплазмы», с рибосомами и всем прочим, только без ДНК. Мембраны кормовых липосом почти такие же, как у искусственных клеток, но в их состав входит один дополнительный липид, способный прочно связывать цепочки из нескольких остатков гистидина. Такие цепочки как раз имеются у белка αHL, который синтезируется в искусственной клетке и встраивается в ее мембрану. На этом основаны питание и рост искусственных клеток: белок αHL, сидящий на мембране клетки, связывается с мембранным липидом кормовой липосомы, благодаря этому их мембраны сближаются и сливаются, а содержимое объединяется.
Для подсчета поколений внутрь кормовых липосом помещали также особый РНК-олигонуклеотид — метку данного раунда кормления (рис. 1).
Таким образом, питание искусственной клетки — это нечто большее, чем то, что мы привыкли называть питанием. Обычные живые клетки тоже могут поглощать сложные молекулы и готовые к работе молекулярные комплексы (например, когда поедают другие клетки). Но всё это потом, как правило, расщепляется на простые составляющие, из которых клетка уже сама строит необходимые ей ферменты, рибосомы и мембраны. Искусственная клетка получает с пищей значительную часть уже собранного клеточного оборудования, которое она использует как есть, без «лишних» этапов переваривания и биосинтеза. В принципе, в живой природе подобное тоже встречается. В качестве примера можно привести клептопластию (см. Нефотосинтезирующий планктонный организм мерингосфера ворует пластиды у водорослей, «Элементы», 21.09.2023). Подчеркивая абсолютную зависимость искусственной клетки от получаемых с пищей молекул и молекулярных комплексов, исследователи нежно называют свое творение «идеальным гетеротрофом» (perfect heterotroph).
Главная инженерная находка авторов — способ связать питание и рост с экспрессией собственного гена синтетической клетки. Эту роль играет ген мембранного белка αHL. Белок синтезируется внутри клетки и самопроизвольно встраивается в ее мембрану, образуя сквозную пору. Исследователи модифицировали белок αHL таким образом, чтобы он прочно связывался с одним из компонентов мембраны кормовой липосомы. На этом основано питание искусственной клетки. Главная идея здесь в том, что тем самым создается непосредственная связь между генотипом клетки и ее важнейшим фенотипическим признаком — скоростью питания. Чем больше белка αHL производит клетка, тем эффективнее она связывает и поглощает кормовые пузырьки. Таким образом, экспрессия одного гена напрямую влияет на поступление ресурсов, увеличение объема клетки и рост мембраны.
Белок αHL играет и вторую роль. Его пора пропускает небольшие молекулы, поэтому клетка обменивается аминокислотами, нуклеотидами и другими низкомолекулярными веществами с окружающим раствором без слияния с кормовой липосомой. Этот транспорт пассивен: у клетки нет насосов, и движение происходит исключительно по градиенту концентрации. Крупные объекты, такие как рибосомы, белки, ДНК и РНК, через канал пройти не могут и поступают только при слиянии мембран. Именно пассивный транспорт через пору αHL имеется в виду под «удалением отходов» на рис. 1, ничего более серьезного за этим не стоит.
Таким образом, биохимические процессы в синтетической клетке сводятся к трем группам реакций: 1) РНК-полимераза фага T7 синтезирует матричные РНК, 2) рибосомы при помощи факторов трансляции переводят их последовательность в белки, 3) полимераза Φ29 копирует геномную ДНК. Эти процессы расходуют поступающие с пищей нуклеотиды, аминокислоты и химическую энергию. Кроме того, синтезированный в клетке белок αHL встраивается в мембрану и обеспечивает дальнейшее питание.
Собственной энергетики в привычном смысле у системы нет. В ней не происходят гликолиз, фотосинтез или окислительное фосфорилирование; нет электронно-транспортной цепи, протонного градиента и АТФ-синтазы. АТФ поступает в готовом виде, как и другие нуклеозидтрифосфаты. Новые порции всех необходимых веществ доставляются кормовыми липосомами, а не очень крупные молекулы могут также поступать из окружающего раствора через поры αHL.
Внешний раствор, среду, в которой «идеальные гетеротрофы» демонстрировали подобие жизни, исследователи специально насыщали аминокислотами, нуклеотидами, солями и энергетическими субстратами примерно в тех же концентрациях, что и внутри искусственных клеток. Это важно, потому что поры αHL иначе привели бы не только к поступлению пищи, но и к утечке содержимого клетки.
Достижения новой искусственной клетки
При всей своей очевидной ущербности и неавтономности, новая синтетическая клетка представляет собой важный шаг на пути к созданию полноценных искусственных организмов, потому что она справляется сразу с несколькими задачами, которые до сих пор либо вообще были вне компетенции искусственных клеток, либо выполнялись по отдельности, но не вместе.
Во-первых, удалось продемонстрировать «жизнеподобное поведение» в виде пяти последовательных циклов питания, роста и размножения. Эти циклы даже можно без большой натяжки назвать «поколениями». Главная оговорка состоит в том, что клетки в этом опыте не делились самостоятельно: на стадии размножения им физически помогали экспериментаторы.
Каждый цикл был устроен так: сначала к суспензии синтетических клеток добавляли порцию кормовых липосом. Клетки питались, то есть сливались с липосомами, в течение 12 часов при осторожном помешивании. Затем подросшие клетки пропускали через фильтр с порами диаметром 2 мкм. При прохождении через узкие поры крупные пузырьки деформировались и механически разделялись на более мелкие — условные дочерние клетки. К ним снова добавляли порцию кормовых липосом, и так далее.
Таким образом, размножение проходило в форме принудительного механического дробления выросших пузырьков. Это трудно назвать автономным клеточным циклом, потому что момент разделения задавал исследователь, а не сама клетка.
Эту последовательность повторили пять раз. У клеток третьего, четвертого и пятого поколений проверяли, во-первых, сохранность генома (присуствие всех семи плазмид свидетельствовало об успешной репликации ДНК), во-вторых, экспрессию генов (по количеству зеленого флуоресцирующего белка GFP), в-третьих — снимали показания счетчика поколений, состоящего из олигонуклеотидных меток, которые в каждой из пяти порций кормовых липосом были разными. Наличие всех пяти меток в данной клетке говорит о том, что ее предки, как минимум, питались в каждом из пяти циклов.
После пятого раунда полный набор из семи плазмид был обнаружен примерно у 30% проанализированных клеток, синтез GFP регистрировался у 60%, полный набор олигонуклеотидных меток — тоже примерно у 60%. Таким образом, содержимое синтетических клеток худо-бедно выдержало пять циклов роста и принудительного разделения.
Во-вторых, в последующих опытах удалось заставить синтетические клетки делиться чуть менее неестественным способом, по крайней мере без насильственного пропускания через фильтр. Для этого в геном клеток добавили дополнительный ген, кодирующий другую версию белка αHL, у которой вместо гистидинового хвоста (необходимого, как мы помним, для питания) имеется другая пептидная метка под названием FLAG (пептид из восьми аминокислот, широко используемый в биоинженерии). Клетки экспрессировали оба гена, и на их мембранах, соответственно, оказывались обе версии αHL: с гистидиновым хвостом и с FLAG (рис. 2). Первая версия, His-αHL, служила, как и раньше, для питания. Вторая же версия, FLAG-αHL, изображала из себя «белок, контролирующий клеточное деление». Чтобы он действительно контролировал деление, экспериментаторы добавили в раствор два белка: биотинилированное антитело к FLAG и стрептавидин (белок, связывающийся с биотином). Антитело прикреплялось к FLAG на мембране клетки, а стрептавидин прикреплялся к антителу. Накопление этих громоздких белковых конструкций на мембране искривляло ее и повышало вероятность того, что мембранный пузырек развалится на два («размножится»). Эксперименты показали, что чем больше белка FLAG-αHL производит искусственная клетка, тем с большей вероятностью (или большее число раз — методика эксперимента не позволяла различить эти варианты) она поделится при добавлении в раствор антитела и стрептавидина.
Количество производимого клеткой белка FLAG-αHL определяется регуляторной последовательностью — промотором, который привлекает РНК-полимеразу и управляет экспрессией гена.
Таким образом, действительно можно сказать, что геном клетки контролировал клеточное деление. Правда, такое «генетически контролируемое» деление пока не удалось поставить на поток, то есть продемонстрировать его в череде поколений. На данный момент показана лишь принципиальная возможность деления таким способом. Но это, будем надеяться, временная трудность, которую удастся преодолеть в обозримом будущем.
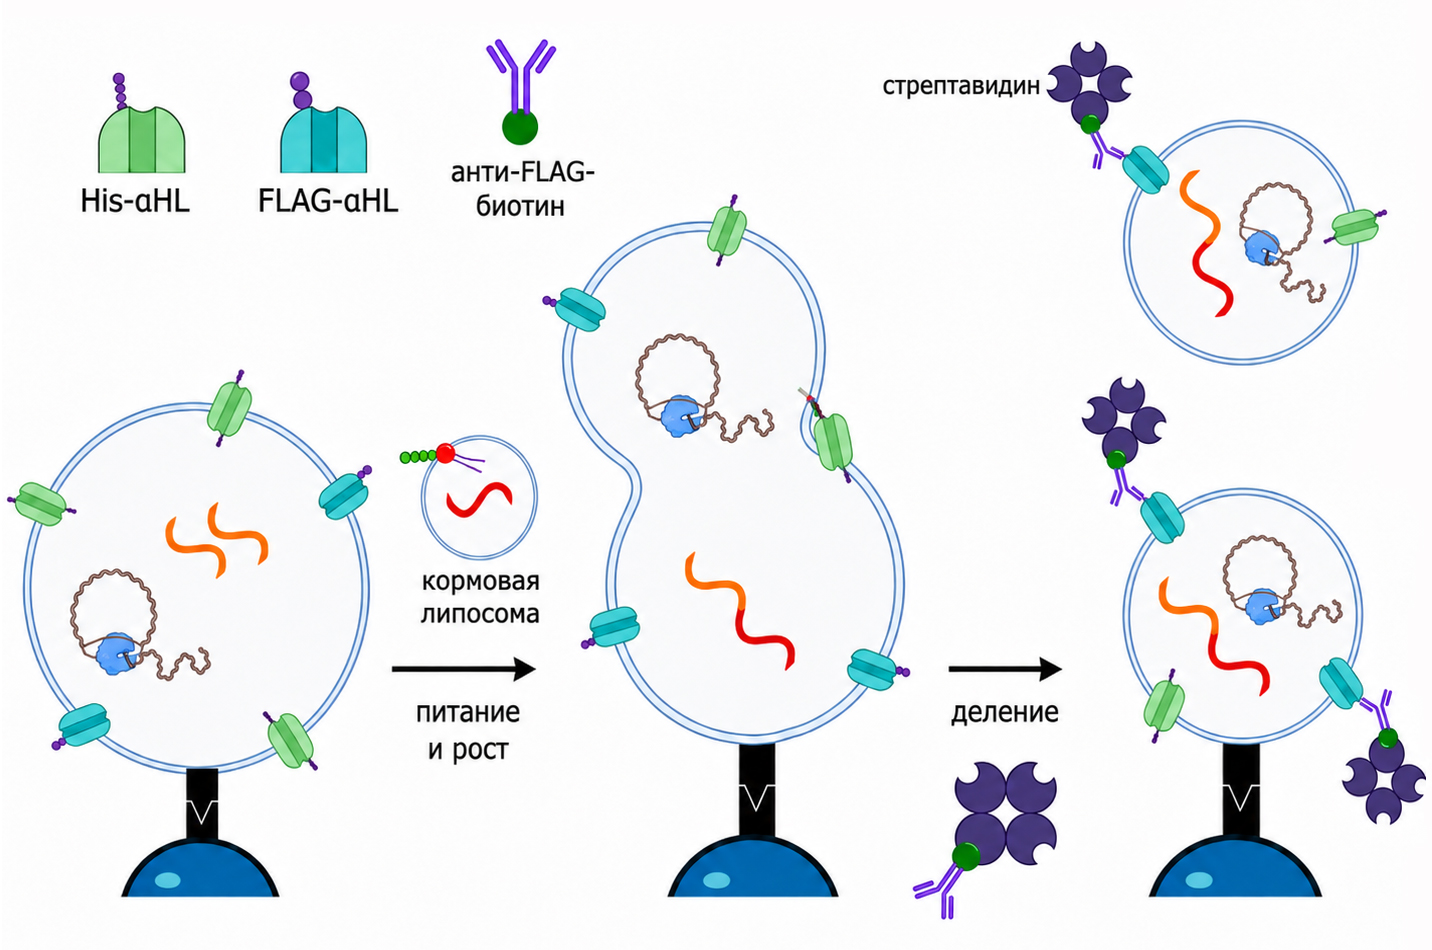
Рис. 2. Генетически запрограммированные рост и деление искусственных клеток. Клетка экспрессирует два варианта белка αHL — с гистидиновым хвостом и с меткой FLAG. Конструкция из биотинилированного антитела к FLAG и стрептавидина прикрепляется к мембране и стимулирует деление клетки. Родительские клетки остаются прикрепленными к субстрату (магнитному шарику), а дочерние уплывают в раствор, что позволяет потом их подсчитать. Рисунок из обсуждаемого препринта
Третье, и, пожалуй, самое интересное достижение состоит в том, что авторам удалось заставить генетически гетерогенную популяцию синтетических клеток чуть-чуть поэволюционировать. Как и другие жизнеподобные свойства искусственной клетки, эволюция была продемонстрирована лишь в самом минимальном объеме. Но всё же это была настоящая эволюция. Ну или почти настоящая — смотря насколько строгим будет наш критический взгляд.
Идея эксперимента была проста. Мы помним, что питание клетки определяется белком His-αHL. Поэтому логично предположить, что в условиях дефицита пищи селективное преимущество получат те клетки, которые производят больше His-αHL. Чтобы это проверить, авторы создали генетически гетерогенную популяцию искусственных клеток. У половины клеток ген His-αHL находился под управлением сильного промотора (T7max на рис. 1), который эффективно привлекает РНК-полимеразу и обеспечивает высокий уровень экспрессии гена. У остальных клеток тот же ген находился под управлением слабого промотора (T7 на рис. 1). Кроме промотора, два типа клеток различались цветом флуоресцентных белков, закодированных в их геномах (для удобства подсчета клеток). В дополнительном эксперименте флуоресцентные белки поменяли местами, чтобы убедиться, что сами по себе они не влияют на результат.
Гетерогенную популяцию с исходно равным соотношением клеток двух типов кормили и «размножали» путем пропускания через фильтр в течение пяти поколений. На выходе подсчитали соотношение клеток T7max и T7. Эксперимент проводили как в условиях избытка пищи (кормовых липосом), так и в условиях их дефицита.
Оказалось, что при избытке пищи (когда количество кормовых липосом в каждом раунде кормления было таким же, как и в предыдущих экспериментах) доля клеток T7max выросла за пять поколений от 50% до 60%. То есть эти клетки действительно росли и размножались быстрее, чем клетки T7, но преимущество было небольшим.
При дефиците пищи (количество кормовых липосом уменьшили в 10 раз) преимущество усилилось: за те же пять поколений частота аллеля T7max выросла до 70%, а доля T7, соответственно, снизилась до 30%.
Элементарный акт микроэволюции — это изменение частоты аллеля в популяции в ряду поколений. Именно это и было продемонстрировано в эксперименте. Более того, острая конкуренция за ограниченный ресурс (кормовые липосомы) усилила влияние генетически обусловленного фенотипического различия на дарвиновскую приспособленность. То же самое нередко происходит и у настоящих живых организмов (см. Экспериментальное изучение естественного отбора в природе: для островных ящериц конкуренция важнее хищников, «Элементы», 21.05.2010).
Пожалуй, главное ограничение, все-таки не позволяющее назвать это полноценной эволюцией, состоит в том, что генетический полиморфизм был спроектирован и создан искусственно, а не возник в результате спонтанных мутаций.
Значение работы и перспективы на будущее
Обсуждаемая статья — наглядный срез современного состояния одной из самых интересных областей биоинженерии — создания искусственных клеток из отдельных неживых компонентов. Она показывает, что от простых липосом с одной-двумя функциями ученым уже удалось довольно далеко продвинуться в сторону комплексных систем с геномом, экспрессией генов и клеточным циклом.
Исследование не имеет прямого отношения к изучению абиогенеза. Авторы не пытались воспроизвести исторический путь возникновения жизни, а конструировали клетку методом целенаправленного проектирования. При этом они использовали сложные компоненты (белки, рибосомы, фосфолипиды, коферменты), заимствованные у современных живых организмов, то есть готовые результаты миллиардов лет биологической эволюции. Тем не менее такие работы полезны для исследований происхождения жизни: они позволяют экспериментально проверять, какие функции действительно необходимы для устойчивого воспроизводства примитивной клетки и каков минимальный набор средств, необходимых для согласования репликации наследственного материала, роста мембраны, питания и деления.
Конечно, проблем еще очень много. Описанные в статье искусственные клетки пока не имеют даже подобия нормального метаболизма. Они полностью зависят от готовых рибосом, белков и низкомолекулярных веществ, поступающих с кормовыми липосомами. Цикл из пяти поколений был получен лишь при помощи механического разделения пузырьков, а не самопроизвольного клеточного деления. Не решены проблемы распределения копий генома между потомками, регуляции экспрессии, протеостаза (см. Proteostasis) и, конечно, биосинтеза большинства необходимых компонентов внутри самой клетки, из-за отсутствия которого малейшее изменение в составе кормовых липосом может оказаться фатальным для клетки.
И всё же это важный шаг вперед. Авторам впервые удалось объединить в одной системе, собранной из полностью известных компонентов, репликацию многоплазмидного генома длиной в 90 тысяч пар оснований, генетически управляемое питание и рост, несколько последовательных поколений, конкуренцию и отбор, а также механизм самостоятельного (ну, почти) размножения, скорость которого зависела от генотипа клетки.
Можно ожидать, что в обозримом будущем искусственные клетки станут еще больше похожи на настоящие, а в каких-то важных практических аспектах превзойдут их — примерно как искусственный интеллект, на наших глазах догоняющий, а по отдельным показателям уже безнадежно обогнавший интеллект естественный. Может быть, не за горами день, когда искусственные клетки станут незаменимыми помощниками человека в самых разных сферах: программируемыми микрореакторами, биосенсорами, средствами локального производства и доставки нужных молекул и много чем еще. Какие-то из их будущих применений мы сегодня, скорее всего, не можем даже вообразить.
Джерело: Элементы
 Поділитися